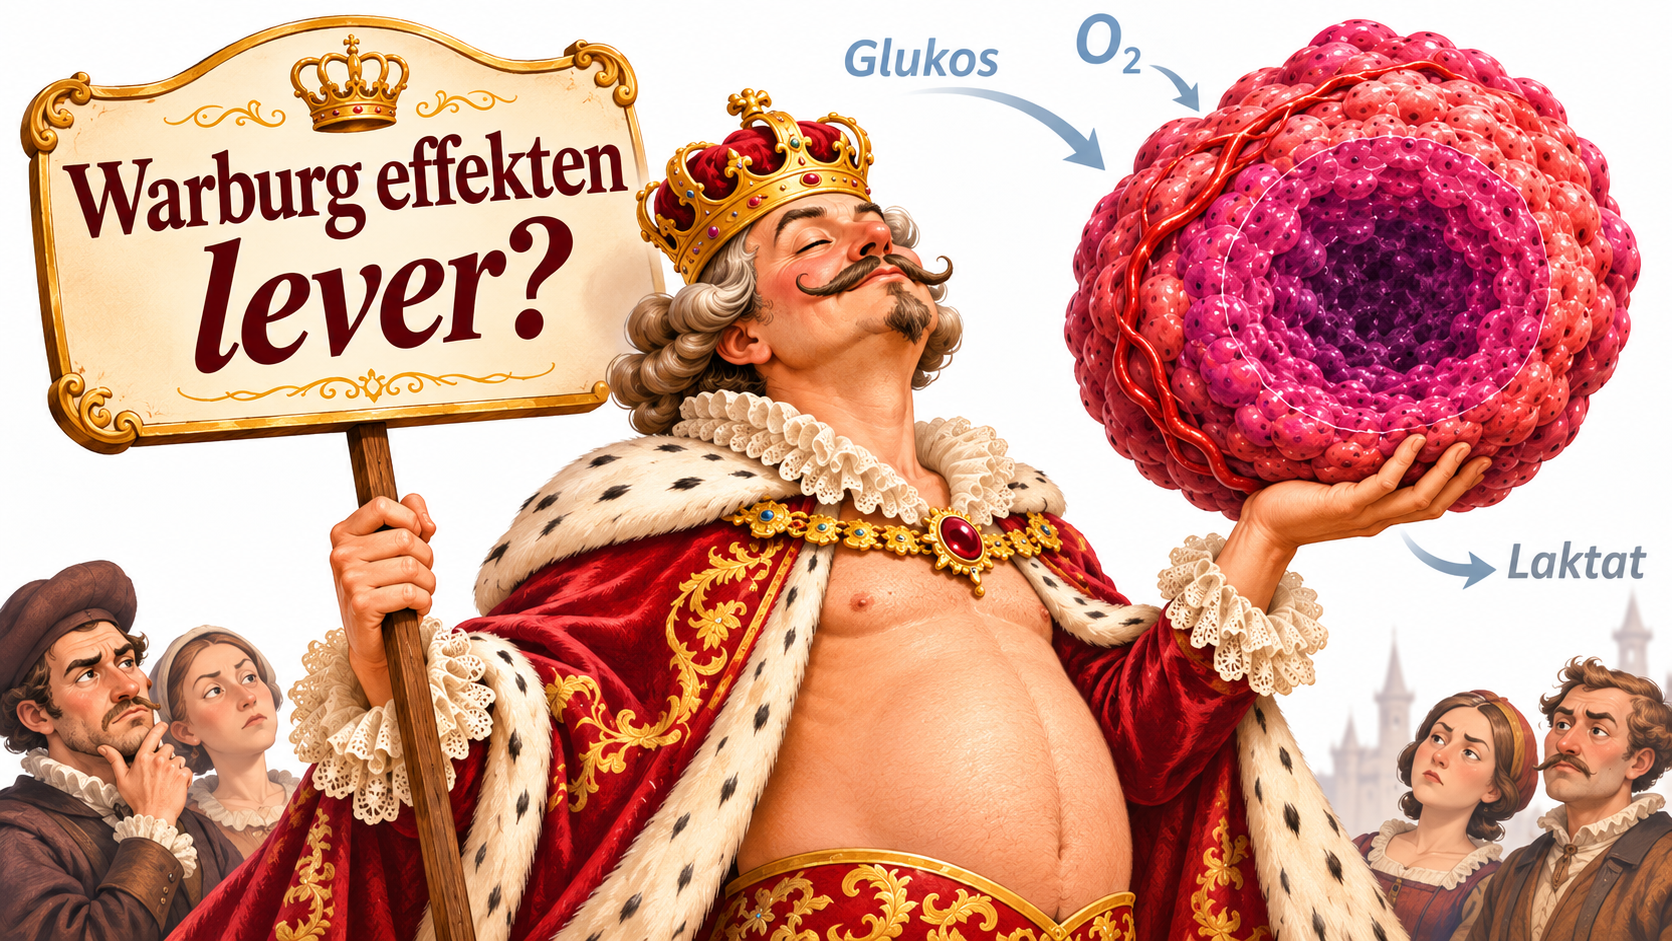
Jag är personligen övertygad om att den klassiska Warburgeffekten inte spelar någon roll för energimetabolismen i solida tumörer.
Det kan tyckas vara ett märkligt påstående. Under mer än hundra år har Warburgeffekten haft en närmast dogmatisk ställning inom cancerforskningen. Den beskrivs fortfarande som ett grundläggande kännetecken för cancerceller och är central i berättelsen om cancerns förändrade metabolism.
En sökning på Google Scholar efter "Warburg effect", begränsad till publikationer sedan 2025, gav omkring 18 000 träffar. Siffran är en uppskattning av antalet sökträffar och inte ett exakt antal vetenskapliga artiklar, men illustrerar vilken enorm uppmärksamhet fenomenet fortfarande får.
Men förtjänar det verkligen denna uppmärksamhet?
Bakom det omfattande vetenskapliga intresset döljer sig nämligen en grundläggande fråga:
Var finns de övertygande bevisen för att aerob glykolys – den klassiska Warburgeffekten – är en dominerande metabol process i levande solida tumörer?
I H.C. Andersens saga Kejsarens nya kläder beundrade alla kejsarens fantastiska kläder. Ingen vågade ifrågasätta det som alla andra tycktes se. Men när ett barn till slut sade vad det såg blev det uppenbart att kejsaren inte hade några kläder.
Jag undrar om det finns en parallell inom tumörmetabolismen.
Det finns omfattande belägg för att både cancerceller och friska celler producerar laktat trots god syretillgång i cellodling. Fenomenet är alltså inte unikt för cancer.
Vi vet också att levande tumörer tar upp glukos och att vissa tumörer nettoexporterar laktat till cirkulationen.
Men detta är inte samma sak som att visa att väl syresatta tumörceller huvudsakligen använder glykolys för sin ATP-produktion och samtidigt omvandlar stora mängder glukos till laktat.
Det som saknas är övertygande bevis för den dominerande roll som Warburgeffekten så ofta tillskrivs i levande tumörer.
Min uppfattning är att tumörernas glukosupptag och laktatproduktion förklaras av etablerad biokemi, begränsad syretillgång och ett omfattande metaboliskt samarbete mellan olika delar av tumörvävnaden.
Vad är egentligen Warburgeffekten?
På 1920-talet observerade Otto Warburg att tumörvävnad i laboratorieförsök förbrukade glukos och bildade stora mängder laktat även i närvaro av syre.
Detta kom att kallas aerob glykolys eller Warburgeffekten.
För att förstå varför observationen är märklig behöver vi skilja mellan två sätt att producera energi.
Vid tillräcklig syretillgång använder cellerna oxidativ fosforylering, OXPHOS, i mitokondrierna. Där utnyttjas energin i glukos, fettsyror, laktat och andra bränslen mycket effektivt.
När syretillgången blir otillräcklig begränsas däremot den oxidativa energiproduktionen. Cellerna blir då mer beroende av glykolys, där glukos bryts ned till pyruvat samtidigt som ATP bildas.
Men för att glykolysen ska fortsätta måste NADH återoxideras till NAD⁺.
När syrebristen begränsar mitokondriernas respiration blir omvandlingen av pyruvat till laktat genom enzymet laktatdehydrogenas, LDH, avgörande för att återbilda NAD⁺.
Detta är hypoxisk glykolys – en normal och välkänd anpassning till syrebrist.
Den klassiska Warburgeffekten innebär däremot att cellen producerar omfattande mängder laktat trots att den har tillräckligt med syre för oxidativ energiproduktion.
Det är denna skillnad som är avgörande.
Att en tumör producerar laktat bevisar inte att den uppvisar Warburgeffekten. Laktatet kan komma från tumörens hypoxiska regioner.
Och att en tumör tar upp stora mängder glukos säger inte hur mycket av dess ATP som produceras genom glykolys respektive OXPHOS.
Zu och Guppy ifrågasatte redan 2004 den etablerade bilden
År 2004 publicerade Xin Lin Zu och Michael Guppy artikeln Cancer metabolism: facts, fantasy, and fiction.
Författarna gick igenom fyrtio års forskning om cancercellers energimetabolism och ifrågasatte föreställningen att cancerceller generellt har en inneboende preferens för glykolys jämfört med friska celler.
Deras slutsats var tydlig: forskningen gav inget stöd för att cancerceller som grupp är inneboende glykolytiska.
De framhöll i stället att glykolysen i levande tumörer kunde vara en följd av deras hypoxiska miljö.
Detta är en avgörande skillnad.
Om en tumörcell använder glykolys därför att syret inte räcker till har vi inte demonstrerat den klassiska Warburgeffekten. Vi har demonstrerat en normal metabol anpassning till syrebrist.
Zu och Guppy pekade alltså redan för mer än tjugo år sedan på ett fundamentalt problem med den etablerade bilden av cancermetabolismen.
Detta väcker också frågan hur mycket av den aeroba glykolys som observeras i laboratoriet som egentligen är en konsekvens av odlingsförhållandena.
Ändå lever den traditionella bilden av Warburgeffekten kvar.
Även friska celler uppvisar Warburgeffekten i odling
En särskilt intressant observation är att omfattande aerob glykolys inte är unik för cancerceller i odling.
Även friska, prolifererande celler producerar laktat trots att syre finns tillgängligt.
Detta väcker en uppenbar fråga:
Om både friska celler och cancerceller uppvisar aerob glykolys i cellodling, hur mycket av fenomenet beror då på cancercellernas egenskaper och hur mycket beror på miljön där vi odlar dem?
Vid cellodling används ofta glukoskoncentrationer på 5,5 eller 25 mmol/L.
Den lägre koncentrationen motsvarar ungefär normalt blodglukos, medan den högre är omkring fem gånger så hög. Båda överstiger de låga glukoskoncentrationer som uppmäts i syrefattiga delar av solida tumörer.
Dessutom används normalt en gasmiljö med betydligt högre syrehalt än den som råder i stora delar av levande tumörer. Den faktiska syretillgången vid cellerna påverkas också av deras täthet och syreförbrukning.
Odlingsmediet buffras för att hålla pH på en nivå som gynnar cellernas tillväxt, medan laktatkoncentrationen i färskt odlingsmedium är betydligt lägre än i laktatrika tumörregioner.
Den höga glukostillgången, den goda syretillgången, det relativt höga pH-värdet och den låga laktatkoncentrationen skapar gynnsamma förutsättningar för omfattande glykolys och laktatexport.
Dessa förhållanden skiljer sig från den syrebegränsade, laktatrika och sura miljön i levande tumörer.
Riklig näringstillgång stimulerar cellernas energimetabolism och biosyntes. Samtidigt har OXPHOS en begränsad kapacitet, även när syre finns tillgängligt.
Om glykolysen levererar pyruvat och NADH snabbare än den oxidativa metabolismen kan hantera dem fortsätter laktatproduktionen trots att mitokondrierna arbetar.
Men ett högt glukosupptag innebär inte att OXPHOS är avstängd.
Guppy och medarbetare visade redan 2002 att cirka 80 procent av ATP-produktionen i prolifererande MCF-7-bröstcancerceller kom från oxidativa processer och endast 20 procent från glykolys, under deras experimentella förhållanden.
Det är ett talande resultat.
Även cancerceller som växer under gynnsamma laboratorieförhållanden producerade alltså merparten av sin ATP genom OXPHOS i detta experiment.
Men forskarna gjorde ytterligare en viktig observation.
Bidraget från aerob glykolys i MCF-7-cellerna skilde sig inte från det hos flera undersökta icke-transformerade celltyper.
Det som brukar beskrivas som ett karakteristiskt metaboliskt drag hos cancerceller visade sig alltså inte ens vara cancerspecifikt under dessa odlingsförhållanden.
Varför producerar då sådana celler laktat trots tillgängligt syre?
En förklaring är att glykolysen levererar NADH snabbare än cellens övriga system hinner återoxidera det. Den oxidativa metabolismens kapacitet begränsar samtidigt hur mycket pyruvat som kan användas för vidare oxidation.
LDH återbildar då NAD⁺ genom att reducera pyruvat till laktat.
Detta är biokemiskt möjligt och demonstrerat i cellmodeller.
Men att en sådan metabolism uppstår i odlingsskålen är inte ett bevis för att den spelar en betydande roll i levande tumörer.
Det är just denna extrapolering från cellodling till levande tumörvävnad som jag ifrågasätter.
En levande tumör är ingen odlingsskål
I solida tumörer är miljön radikalt annorlunda.
Blodkärlen är oregelbundet fördelade och fungerar ofta dåligt. Blodflödet varierar kraftigt både mellan olika regioner och över tid.
Samtidigt förbrukar cellerna kontinuerligt syre och näringsämnen.
Resultatet blir att syre, glukos, laktat och andra metaboliter fördelas ojämnt i vävnaden.
Vaupel och hans medarbetare har under flera decennier dokumenterat dessa förhållanden, även i humana tumörer.
En central observation är att tumörceller behåller en betydande oxidativ kapacitet, men att syretillgången begränsar hur mycket denna kapacitet utnyttjas.
Vaupel och Mayer sammanfattade 2012 detta i en artikel med den talande titeln:
Availability, not respiratory capacity governs oxygen consumption of solid tumors.
Med andra ord: i solida tumörer är det i stor utsträckning tillgången på syre, inte avsaknaden av fungerande mitokondrier, som begränsar respirationen.
En annan viktig egenskap är att glukos under vanliga tumörförhållanden når längre från blodkärlen än syre.
Det skapar en metabol zonering.
Nära fungerande blodkärl finns syre för OXPHOS.
Längre från kärlen begränsas den oxidativa energiproduktionen av syrebristen. Cellerna blir där alltmer beroende av glykolys för sin överlevnad.
Men dessa regioner är inte isolerade från varandra.
De är sammanbundna genom transport av glukos, laktat och andra energisubstrat.
Detta förändrar fundamentalt hur tumörens energimetabolism behöver förstås.
Sonveaux 2008 – det metabola samarbetet demonstreras
År 2008 publicerade Pierre Sonveaux och medarbetare ett experiment som jag betraktar som ett av de viktigaste inom modern tumörmetabolism.
Forskarna visade att syresatta tumörceller använder laktat som bränsle för oxidativ fosforylering.
Detta innebar en helt annan syn på laktatets funktion.
I stället för att enbart vara en restprodukt från glykolysen fungerar laktat som ett värdefullt energisubstrat.
Forskarna beskrev ett metaboliskt samarbete mellan tumörens syresatta och hypoxiska regioner.
I de hypoxiska regionerna används glukos för glykolytisk ATP-produktion, samtidigt som laktat bildas.
Laktatet transporteras mot bättre syresatta regioner, där det tas upp av tumörceller genom transportproteinet MCT1.
Där omvandlas laktat till pyruvat och används för oxidativ energiproduktion.
Genom att använda laktat minskar de syresatta cellerna sin förbrukning av glukos.
Därmed når mer glukos de hypoxiska celler som är beroende av glykolys för sin energiförsörjning.
Det innebär att tumörens olika regioner inte bara konkurrerar om energisubstrat. De samarbetar också för att utnyttja den begränsade tillgången på syre och glukos så effektivt som möjligt.
Men Sonveaux nöjde sig inte med att beskriva detta samarbete.
Han prövade dess betydelse experimentellt.
Vad hände när laktatupptaget blockerades?
Forskarna blockerade MCT1 och hindrade därmed de syresatta tumörcellerna från att använda laktat på samma sätt.
Dessa celler ökade då sin glukosförbrukning och glykolys.
Konsekvensen blev att mindre glukos nådde de hypoxiska tumörregionerna.
Där drabbades cellerna av glukosbrist och celldöd.
Genom att störa laktatupptaget i tumörens syresatta regioner kunde forskarna döda celler i de hypoxiska regionerna.
Det är ett anmärkningsvärt resultat.
Experimentet visade att transport och metabolt samarbete har funktionell betydelse för tumörens överlevnad.
Samma år uppmärksammade Gregg Semenza resultaten i artikeln Tumor metabolism: cancer cells give and take lactate.
Titeln fångar precis det som försvinner i den förenklade berättelsen om Warburgeffekten:
Tumörceller producerar inte bara laktat. De använder också laktat som ett oxidativt bränsle.
Läs Sonveaux och medarbetare (2008)
LDH – en reaktion som inte kan gå netto åt två håll samtidigt
Här finns ytterligare ett grundläggande biokemiskt problem för föreställningen att Warburgeffekten skulle vara den dominerande metabolismen i tumörens syresatta regioner.
Enzymet laktatdehydrogenas, LDH, katalyserar reaktionen:
Pyruvat + NADH + H⁺ ⇌ Laktat + NAD⁺
Reaktionen är reversibel och ligger nära jämvikt.
Det betyder att nettoriktningen bestäms av koncentrationerna av laktat, pyruvat, NADH och NAD⁺ samt av intracellulärt pH.
En hög NADH/NAD⁺-kvot gynnar nettobildning av laktat.
En hög laktatkoncentration i förhållande till pyruvat motverkar däremot fortsatt nettolaktatbildning, om övriga förhållanden är oförändrade.
Det finns här en enkel men viktig begränsning:
En och samma homogena intracellulära LDH-pool kan inte samtidigt ha ett nettoflöde från pyruvat till laktat och ett nettoflöde från laktat till pyruvat.
En bil kan köra både framåt och bakåt, men knappast i båda riktningarna samtidigt.
Det betyder inte att glykolys och OXPHOS är ömsesidigt uteslutande. En cell använder båda processerna samtidigt under många förhållanden.
Det betyder inte heller att LDH-molekylerna bara katalyserar reaktionen i en riktning. Vid nära jämvikt sker ett omfattande utbyte i båda riktningarna.
Men nettoflödet genom ett homogent reaktionssystem har en bestämd riktning.
Om en syresatt tumörcell nettooxiderar laktat till pyruvat genom LDH, kan samma LDH-system inte samtidigt ha ett nettoflöde åt motsatt håll.
Det är därför avgörande att skilja mellan glykolytisk ATP-produktion och den klassiska Warburgfenotypens nettolaktatproduktion.
Det är teoretiskt möjligt att olika intracellulära miljöer eller förändringar över tid medger mer komplicerade metabola flöden.
Men sådana möjligheter måste demonstreras innan de används för att förklara tumörernas metabolism.
För mig innebär detta att Sonveaux' resultat är mer än ett exempel på metabol flexibilitet.
De skapar ett konkret problem för antagandet att de syresatta tumörcellerna generellt domineras av omfattande nettolaktatproduktion från glukos.
Om laktat förbrukas oxidativt i dessa celler kan inte samma LDH-system samtidigt ha den motsatta nettoriktning som krävs för nettolaktatproduktion enligt den klassiska Warburgfenotypen.
Högt laktat och lågt pH – ytterligare en begränsning
LDH-reaktionen är bara en del av problemet.
För att en cell ska fortsätta producera och exportera laktat måste också transporten genom cellmembranet fungera.
Laktat transporteras huvudsakligen tillsammans med protoner genom monokarboxylattransportörer, MCT.
Transportens nettoriktning bestäms därför av koncentrationsgradienterna för laktat och protoner över cellmembranet.
I solida tumörer är extracellulärt laktat förhöjt och extracellulärt pH ofta lågt.
Dessa förhållanden motverkar fortsatt laktatexport. När koncentrationsgradienterna för laktat och protoner inte längre medger ett utåtriktat nettoflöde upphör exporten genom den protonkopplade transportören.
Tumörceller håller dessutom normalt sitt intracellulära pH högre än det extracellulära, vilket påverkar den protonkopplade transportens riktning.
Det innebär att omfattande laktatproduktion i en levande tumör inte bara kräver ett högt glykolytiskt flöde.
Fortsatt nettobildning och export kräver också att LDH-reaktionens redoxdrivkraft och transportförhållandena tillåter det.
Här blir syrebristen central.
När mitokondriernas respiration begränsas av otillräcklig syretillgång minskar deras förmåga att bidra till återoxidationen av cytosoliskt NADH.
Då ökar behovet av att återbilda NAD⁺ via LDH.
En ökad NADH/NAD⁺-kvot driver LDH-reaktionen mot laktatbildning.
Pyruvat reduceras till laktat, NAD⁺ återbildas och glykolysen fortsätter producera ATP.
Det centrala är alltså inte ett överskott av pyruvat, utan cellens behov av att återbilda NAD⁺ när mitokondriernas oxidativa metabolism inte längre räcker till.
Det är därför syrebrist är en så kraftfull drivkraft för laktatproduktion.
Och eftersom syrebrist är en grundläggande egenskap hos solida tumörer finns här en direkt biokemisk förklaring till varför tumörer producerar laktat.
Den förklaringen kräver inte att vi antar en generell Warburgeffekt.
Sauer och Dauchy 1985 – tumören ändrar laktatflödet på några minuter
En studie som jag tycker borde få betydligt större uppmärksamhet publicerades redan 1985 av Lawrence Sauer och Robert Dauchy.
Forskarna undersökte levande tumörer hos råttor genom att mäta arteriovenösa skillnader i bland annat glukos och laktat.
Det gjorde det möjligt att avgöra om tumörerna netto tog upp eller frisatte dessa ämnen.
Resultaten var fascinerande.
I de undersökta tumörmodellerna var vissa tumörer nettoproducenter av laktat medan andra var nettokonsumenter.
Bland de undersökta Walker 256-tumörerna tog 26 procent upp laktat från blodet. Motsvarande andel bland Morris 5123C-hepatomen var 48 procent.
Samtidigt var tumörernas glukosförbrukning vid steady state likartad hos laktatproducerande och laktatkonsumerande tumörer.
Men den mest anmärkningsvärda observationen var att en och samma tumör inom några minuter växlade från nettolaktatproduktion till nettolaktatupptag när laktatkoncentrationen i det arteriella blodet höjdes.
Detta visar en enorm metabol flexibilitet.
På några minuter hinner en tumör knappast bygga om hela sin mitokondriella apparat eller genomföra några omfattande förändringar av enzymkapaciteterna.
Däremot förändras transportflöden, substratkoncentrationer och reaktionsjämvikter snabbt.
Resultaten visar därför hur starkt tumörens metabola beteende påverkas av dess omgivning.
Sauer och Dauchy mätte nettoflödet över hela tumören. Studien visade därför inte att varje enskild cell bytte LDH-riktning.
Förändringen kan också ha uppstått genom att balansen mellan laktatproducerande och laktatkonsumerande tumörregioner förändrades.
Men huvudresultatet är lika intressant oavsett vilken mekanism som dominerade.
En och samma levande tumör växlade på några minuter mellan att producera och konsumera laktat när blodets laktatkoncentration förändrades. Detta visar hur snabbt tumörens metabolism reagerar på förändrade substratförhållanden.
Det är svårt att förena med föreställningen att omfattande laktatproduktion skulle vara en fast, inneboende egenskap hos cancercellerna.
För mig är Sauer och Dauchys resultat ett av de tydligaste exemplen på varför tumörmetabolismen måste förstås som ett dynamiskt system.
Faubert respektive Hui 2017 – laktat som bränsle även i levande tumörer
Nästan tio år efter Sonveaux publicerades ytterligare två viktiga arbeten.
Faubert och medarbetare undersökte metabolismen i humana lungtumörer genom isotopmärkning av energisubstrat hos patienter.
Forskarna visade att kol från cirkulerande laktat återfanns i tumörernas citronsyracykel.
Detta var ett viktigt resultat eftersom det demonstrerade att laktat bidrar till den oxidativa metabolismen även i levande humana tumörer.
I kompletterande experimentella tumörmodeller hos möss gick forskarna ett steg längre. Genom direkta jämförelser mellan glukos och laktat visade de att laktat bidrog med mer kol till citronsyracykeln än glukos.
Laktat var alltså inte bara ett alternativt bränsle. I dessa tumörmodeller var det en viktigare kolkälla för den oxidativa metabolismen än glukos.
Särskilt intressant var också att laktatanvändningen i de humana lungtumörerna var tydlig i tumörer med hög FDG-PET-signal.
Det innebär att en tumör med högt upptag av glukosanalogen FDG samtidigt använder laktat som oxidativt substrat.
Högt FDG-upptag är alltså inte liktydigt med att tumören huvudsakligen använder glykolys för sin ATP-produktion.
FDG tas upp av cellerna och fosforyleras av hexokinas. Till skillnad från vanligt glukos metaboliseras FDG-6-fosfat inte vidare genom glykolysen i någon större omfattning, utan ansamlas i cellerna.
FDG-PET mäter därför inte direkt flödet från glukos till laktat eller hur mycket ATP som bildas genom glykolys.
Faubert och medarbetare påpekade också en viktig begränsning.
Isotopmärkning visar att laktatkol når citronsyracykeln, men fastställer inte automatiskt nettolaktatflödet över tumören.
Forskarna kunde inte genomföra en fullständig kvantitativ balans över hur mycket glukos som togs upp och hur mycket laktat som exporterades från de humana tumörerna.
Det är särskilt relevant för frågan om Warburgeffekten.
Utan att mäta nettolaktatproduktionen och samtidigt relatera den till den lokala syretillgången går det inte att avgöra hur mycket av tumörens laktatproduktion som verkligen är aerob.
Faubert bekräftade dessutom betydelsen av laktattransportören MCT1 genom att genetiskt slå ut transportproteinet i experimentella tumörer hos möss. Detta minskade kraftigt den laktatberoende märkningen av tumörernas centrala metabolism.
Samma år visade Hui och medarbetare att cirkulerande laktat är en betydande kolkälla för citronsyracykeln i flera vävnader och experimentella tumörmodeller hos möss.
Det innebar ytterligare ett steg bort från den traditionella bilden av laktat som enbart en avfallsprodukt.
Laktat framträder i stället som en viktig del av kroppens och tumörernas utbyte av energisubstrat.
Tillsammans med Sonveaux, Semenza och Sauer ger dessa arbeten en tydlig bild av en dynamisk tumörmetabolism där laktat produceras, transporteras och används som oxidativt substrat.
Vad betyder detta för Warburgeffekten?
Här måste vi återvända till den grundläggande vetenskapliga frågan.
Vad är det egentligen som har demonstrerats?
Vi vet att både friska celler och cancerceller producerar laktat trots tillgång till syre i cellodling.
Vi vet att tumörer tar upp glukos.
Vi vet att vissa tumörer nettoexporterar laktat.
Vi vet att hypoxiska celler blir beroende av glykolytisk ATP-produktion när syretillgången inte räcker för deras energibehov.
Vi vet också att tumörceller använder laktat som oxidativt bränsle och att detta ingår i ett funktionellt metaboliskt samarbete mellan olika tumörregioner i experimentellt undersökta tumörer.
Men var har man i en levande human tumör övertygande demonstrerat att väl syresatta cancerceller, med bevarad oxidativ kapacitet, nettoomvandlar stora mängder glukos till laktat och att denna process utgör en dominerande del av tumörens energimetabolism?
Att en tumör producerar laktat räcker inte, eftersom det kan bero på hypoxi.
Att tumören tar upp stora mängder glukos räcker inte, eftersom glukos används till många andra processer och också oxideras.
Att isotopmärkt glukos återfinns i laktat räcker inte heller för att bestämma det lokala nettoflödet eller dess energimässiga betydelse.
Och att en cell uppvisar aerob glykolys i odling bevisar inte att samma process har betydelse i en levande tumör.
Därtill kommer att oxidativ laktatanvändning har demonstrerats i syresatta tumörceller.
Som vi redan konstaterat kan samma homogena LDH-system inte ha två motsatta nettoflöden samtidigt.
Olika cellpopulationer kan naturligtvis befinna sig i olika metabola tillstånd. En cell kan också förändra sin metabolism över tid.
Men att dessa möjligheter existerar är inte i sig bevis för att Warburgeffekten har en betydande roll i levande tumörer.
Bevisbördan ligger hos den som hävdar att den klassiska Warburgeffekten är en allmän och dominerande metabol strategi i solida tumörer.
För att pröva detta måste forskarna skilja mellan aerob och hypoxisk laktatproduktion, bestämma relevanta nettoflöden och uppskatta hur stor del av tumörens energimetabolism som dessa processer svarar för.
Först då kan vi avgöra om Warburgeffekten har någon betydelse i levande tumörer.
Kan Warburgeffekten förekomma i vissa tumörer trots allt?
Ja, det är biokemiskt möjligt, men det förutsätter särskilda metabola förhållanden.
Genetiska eller metabola förändringar kan begränsa den oxidativa kapaciteten i vissa tumörtyper. Om återoxidationen av NADH då inte räcker till kan LDH bidra till fortsatt nettolaktatproduktion trots tillgång till syre.
Även väl syresatta tumörceller skulle då kunna producera mätbara mängder laktat.
Det är dock inte bevisat att detta är en betydelsefull process i levande humana tumörer, och min bedömning är att det i solida tumörer sker högst marginellt, om alls.
Det är en fundamental skillnad mellan att en mekanism är biokemiskt möjlig, att den har demonstrerats i laboratoriet och att den är en dominerande metabol process i levande tumörer.
Även om omfattande aerob glykolys demonstreras i en viss human tumör återstår att fastställa hur stor del av tumören som berörs, hur mycket ATP som produceras på detta sätt och hur allmängiltig observationen är.
Min bedömning är att den klassiska Warburgeffekten, om den förekommer i levande tumörer, är ett mycket begränsat fenomen knutet till särskilda tumörtyper eller metabola förhållanden.
Däremot finns en omfattande experimentell och biokemisk grund för att betrakta hypoxisk glykolys, oxidativ metabolism och transport av energisubstrat som centrala delar av solida tumörers energiförsörjning.
Tumörens verkliga metabolism bygger på samarbete och konkurrens
Jag tror att en av de största svagheterna i den traditionella berättelsen om Warburgeffekten är att den riktar uppmärksamheten mot den enskilda cancercellens metabola egenskaper.
Men en solid tumör är inte bara en samling isolerade celler.
Den liknar ett organ mer än vi vanligtvis föreställer oss.
Den är en vävnad där olika regioner lever under helt olika förhållanden.
De syresatta cellerna använder OXPHOS för effektiv ATP-produktion.
De hypoxiska cellerna blir alltmer beroende av glykolys.
Laktat transporteras från producerande till konsumerande celler, samtidigt som glukos transporteras från blodkärlen mot områden där behovet av glykolytisk ATP-produktion är störst.
Detta gör att olika delar av tumören samarbetar om begränsade energiresurser.
Sauer visade hur snabbt tumörens nettolaktatflöde förändras när substrattillgången ändras.
Sonveaux visade hur laktattransport och metabolt samarbete påverkar glukostillförseln och överlevnaden i hypoxiska tumörregioner.
Faubert och Hui visade att laktat bidrar till oxidativ metabolism, även i levande tumörer.
Vaupels forskning visar samtidigt hur den begränsade syretillgången styr förutsättningarna för tumörens respiration.
Tillsammans beskriver dessa resultat en metabolism som är rumsligt organiserad, transportberoende och mycket flexibel.
Det betyder inte att alla tumörer har exakt samma organisation. Tumörtyper skiljer sig åt i vaskularisering, hypoxi, transportkapacitet och metabola egenskaper.
Men vi behöver inte anta någon universell preferens för aerob glykolys för att förklara tumörernas glukosförbrukning och laktatproduktion.
Vi har redan en experimentellt förankrad alternativ förklaring.
Varför spelar detta någon roll för cancerbehandlingen?
Om Warburgeffekten ses som cancercellernas huvudsakliga energimetabolism riskerar behandlingar att utformas som om alla tumörceller hade samma metabola beroende.
Samtidigt beskrivs fenomenet som en preferens för glykolys – vilket inte är detsamma som ett absolut beroende.
Om tumören i stället består av metaboliskt skilda regioner förändras både behandlingsproblemet och cellernas metabola beroenden.
Glukos har en särställning eftersom det genom glykolys ger ATP även utan syre. I de hypoxiska regionerna är glukos och glykolys därför avgörande för cellernas energiförsörjning och överlevnad. Det handlar inte om en preferens. Det handlar om ett metaboliskt beroende.
En intervention som påverkar glukostillgången får olika konsekvenser för hypoxiska och syresatta celler.
En behandling som begränsar laktattransporten påverkar hur energisubstraten fördelas genom tumörvävnaden.
Och en förändring av syretillgången förskjuter balansen mellan glykolys och OXPHOS utan att cellernas grundläggande enzymkapaciteter behöver förändras.
Sonveaux' experiment är ett elegant exempel på hur detta kan utnyttjas.
Genom att hindra syresatta tumörceller från att använda laktat ökade deras glukosförbrukning, vilket berövade de hypoxiska cellerna deras energisubstrat.
Det är ett helt annat sätt att angripa tumörmetabolismen än att utgå från att alla cancerceller har en inneboende preferens för glykolys.
Det betyder inte att hämning av laktat- eller glukostransport redan är en etablerad cancerbehandling. Vägen från experimentell mekanism till kliniskt effektiv behandling måste fortfarande prövas.
Men den centrala frågan är vilka metabola processer tumören faktiskt behöver för sin överlevnad – inte vilka processer cancerceller uppvisar i odlingsskålen.
Kejsarens nya kläder – vad är det vi egentligen ser?
Warburgeffekten har under mer än hundra år haft en särställning inom cancerforskningen.
I dag har vi omfattande experimentella belägg för att tumörer är metaboliskt heterogena, att deras syretillgång är ojämn och att de använder både glukos och laktat för sin energiförsörjning.
Vi har också belägg för att transporten av dessa ämnen kopplar samman olika tumörregioner och påverkar cellernas överlevnad.
Det jag ifrågasätter är varför den klassiska Warburgeffekten fortfarande beskrivs som en dominerande och närmast självklar egenskap hos tumörer, när dess kvantitativa betydelse i levande humana tumörer inte har demonstrerats övertygande.
Jag menar att det är rimligare att utgå från den etablerade biokemin och de dokumenterade förhållandena i tumörvävnaden.
Syrebrist begränsar OXPHOS.
Glykolys möjliggör fortsatt ATP-produktion i hypoxiska regioner.
LDH återbildar NAD⁺ genom laktatbildning.
Laktat transporteras och används som bränsle i bättre syresatta områden.
Och därigenom sparas glukos åt celler som har störst beroende av glykolytisk energiproduktion.
Det är inte enbart en teoretisk konstruktion.
Viktiga delar av detta metabola samarbete har demonstrerats experimentellt, och den underliggande biokemin är väl etablerad.
Min uppfattning är att denna metabola zonering, tillsammans med tumörens begränsade syretillgång och transporten av energisubstrat, beskriver en grundläggande organisationsprincip för solida tumörers energimetabolism.
Men samma krav på vetenskapliga bevis måste också gälla Warburgeffekten.
I dag tillskrivs den en omfattande roll i tumörernas metabolism utan att dess verkliga kvantitativa betydelse i levande humana tumörer har fastställts.
Om någon vill hävda att aerob glykolys är en dominerande energiprocess i levande solida tumörer måste detta också visas – inte bara i odlingsskålen, där även friska celler uppvisar samma fenomen, utan i själva tumörvävnaden.
Kanske är det dags att, liksom barnet i H.C. Andersens saga, våga ställa den enkla men obekväma frågan:
Var finns egentligen de vetenskapliga bevisen för kejsarens kläder?
Referenser
1. Zu XL, Guppy M. (2004). Cancer metabolism: facts, fantasy, and fiction. Biochemical and Biophysical Research Communications, 313, 459–465. https://doi.org/10.1016/j.bbrc.2003.11.136
2. Guppy M, Leedman P, Zu X, Russell V. (2002). Contribution by different fuels and metabolic pathways to the total ATP turnover of proliferating MCF-7 breast cancer cells. Biochemical Journal, 364, 309–315. https://doi.org/10.1042/bj3640309
3. Sauer LA, Dauchy RT. (1985). Regulation of lactate production and utilization in rat tumors in vivo. Journal of Biological Chemistry, 260, 7496–7501. https://pubmed.ncbi.nlm.nih.gov/3997885/
4. Sonveaux P, et al. (2008). Targeting lactate-fueled respiration selectively kills hypoxic tumor cells in mice. Journal of Clinical Investigation, 118, 3930–3942. https://doi.org/10.1172/JCI36843
5. Semenza GL. (2008). Tumor metabolism: cancer cells give and take lactate. Journal of Clinical Investigation, 118, 3835–3837. https://doi.org/10.1172/JCI37373
6. Vaupel P, Mayer A. (2012). Availability, not respiratory capacity governs oxygen consumption of solid tumors. International Journal of Biochemistry & Cell Biology, 44, 1477–1481. https://doi.org/10.1016/j.biocel.2012.05.019
7. Faubert B, et al. (2017). Lactate metabolism in human lung tumors. Cell, 171, 358–371.e9. https://doi.org/10.1016/j.cell.2017.09.019
8. Hui S, et al. (2017). Glucose feeds the TCA cycle via circulating lactate. Nature, 551, 115–118. https://doi.org/10.1038/nature24057
Denna artikel diskuterar vetenskapliga mekanismer och forskningsresultat. Resonemangen är inte behandlingsråd och innebär inte att någon etablerad cancerbehandling bör ändras.
Sture Hobro · Linbro Therapeutics AB
Tänk på att kommentarerna blir offentliga. Undvik egna eller andras känsliga hälsouppgifter. Kommentarer granskas före publicering.
Kommentarer
Så hanteras din kommentar
Linbro Therapeutics AB ansvarar för kommentarerna. Ditt visningsnamn, din text och datum publiceras om kommentaren godkänns. Din ChatGPT-identitet används för inloggning och för att begränsa spam, men visas inte offentligt. Kommentarer som väntar på granskning raderas senast efter 90 dagar. Godkända kommentarer ligger kvar tills de tas bort eller kommentarsfunktionen avvecklas. Skriv inga känsliga hälsouppgifter. Kontakta sture.hobro@linbrotherapeutics.com om du vill få din kommentar borttagen eller har frågor om hanteringen.